Ngày nay có rất nhiều phương pháp kích thích và ức chế vi bào tử nảy chồi. Tuy nhiên các phương pháp đó có hiệu quả như thế nào, đâu là những ưu điểm của các phương pháp đó. Bạn hãy cùng chúng tôi tìm hiểu qua bài viết này nhé.
Vi bào tử trùng (EHP) ký sinh trong tế bào biểu mô gan tụy ở tôm nuôi hoặc một số loài thủy sinh gây thiệt hại kinh tế lớn do tôm chậm lớn và dễ mắc các bệnh cơ hội. Hiện chưa có thuốc hoặc giải pháp hiệu quả để xử lý dịch bệnh này.
Việc nghiên cứu các kỹ thuật kích thích EHP nảy mầm nhân tạo trong ao chứa lắng hoặc ao nuôi thậm chí trong đường ruột tôm hoặc nghiên cứu thuốc ức chế không cho EHP nảy mầm trong ống gan tụy ở tôm nuôi là những kỹ thuật sẽ rất hiệu quả để ngăn ngừa EHP lan tràn theo chiều ngang.
1. Tại sao các phương pháp nhân tạo kích thích hoặc ức chế vi bào tử nảy chồi rất quan trọng trong chiến lược điều trị EHP ở ngành tôm nuôi
1.1. Vi bào tử EHP chỉ có hoạt động sống tích cực và gây hại khi ở trong tế bào vật chủ
Enterocytozoon Hetopancrea (EHP) là mầm bệnh mới nổi trong ngành nuôi tôm thẻ thương phẩm và lan tràn khắp các địa phương nuôi tôm. EHP không gây tôm bị bệnh chết cấp tính nhưng gây thiệt hại kinh tế rất lớn cho người nuôi do làm tôm chậm lớn, tỷ lệ hao hụt lớn, hệ số FCR tăng cao, tăng chi phí nuôi trồng và đặc biệt tôm rất dễ mắc các bệnh đồng nhiễm khác như EMS, AHPND và WSSV dẫn đến vụ nuôi thiệt hại nặng.
Hiện nay EHP được phân loại là một loài nấm, đơn bào, dạng vi bào tử – Microsporodia, lối sống kí sinh nội bào bắt buộc, chỉ ký sinh ở tế bào biểu mô hình ống trong ống gan tụy của một số loài tôm và động vật thủy sinh. EHP không gây bệnh và không sinh sản khi ở bên ngoài tế bào vật chủ. EHP dạng trưởng thành có thành tế bào bền vững và tồn tại dạng tiềm sinh cho tới khi tìm được tế bào vật chủ mới.

1.2. Sự nảy mầm của vi bào tử EHP là cách thức lây nhiễm duy nhất vào tế bào vật chủ
Vì sự nảy mầm của bào tử là cách thức lây nhiễm duy nhất của vi bào tử trùng mà ống cực xuyên qua tế bào chủ và tiêm bào tử lây nhiễm [Weiss et al., 2014]. Nên khi có điều kiện thích hợp, vi bào tử nảy chồi và phóng ống cực ra bên ngoài, ống cực có thể kéo dài tới 500µm trong khi kích thước bào tử EHP chỉ khoảng 1µm [Keeling & Fast, 2002].
Khi ống cực phát triển, phần nội bào của bào tử sẽ được đẩy chui qua lòng ống cực và di chuyển ra ngoài. Nếu may mắn, toàn bộ phần nguyên bào chất chứa nhân theo ống cực sẽ truyền vào trong tế bào chất của vật chủ và bắt đầu một vòng đời mới. Trong phạm vi ngành chăn nuôi thủy sản, nếu trong các nhà khoa học phát triển được các phương pháp kích hoạt sự nảy mầm nhân tạo bên ngoài tế bào gan tụy ở tôm nuôi hoặc ức chế sự nảy mầm của vi bào tử trùng trong khối gan tụy thì có thể chặn đứng được sự gây hại của dịch bệnh này.
Cấu trúc bào tử và cơ chế nảy mầm của vi bào tử trùng và EHP nói riêng là các đặc điểm mang tính bảo thủ cao và cơ bản giống nhau. Hiện nay chưa có nhiều nghiên cứu về phương pháp ức chế sự nảy mầm hoặc gây nảy mầm nhân tạo vi bào tử trùng EHP. Trong bài này chúng tôi sẽ đưa ra nội dung vắn tắt một số nghiên cứu về phương pháp ức chế sự nảy mầm ở vi bào tử trùng nói chung nhằm cung cấp thêm góc nhìn về triển vọng ức chế vi bào tử EHP ở ngành nuôi tôm.
1.3. Sự nảy chồi hoặc ức chế nảy chồi bị chi phối bởi nhiều yếu tố từ bên ngoài
Sự nảy mầm của bào tử có thể được kích hoạt nhân tạo bởi nhiều tác nhân kích thích từ môi trường, chúng rất khác nhau tùy theo loài và môi trường sống [Keeling and Fast, 2002]. Các vi bào tử có thể nảy mầm bằng nhiều yếu tố kích thích vật lý và hóa học [Cali và Takvorian, 2014, Keeling và Fast, 2002, Vávra và Larsson, 2014, Weiss và cộng sự, 2014]. Nếu trong tương lai gần xuất hiện những phương pháp kích hoạt sự nảy chồi nhân tạo hoặc ức chế sự nảy mầm đạt hiệu quả như mong muốn thì việc áp dụng những kỹ thuật đó để loại bỏ EHP khỏi ao nuôi không quá khó khăn. Vậy nên các nghiên cứu về sự nảy chồi chắc chắn có giá trị áp dụng thực tiễn rất cao.
1.4. Các công đoạn trong quy trình nuôi tôm tương lai có thể áp dụng các kỹ thuật nhân tạo gây nảy mầm hoặc ức chế nảy mầm để ngăn chặn EHP lây lan
– Kích hoạt sự nảy mầm của vi bào tử trong ao lắng, ao chứa, ao xử lý nước, ao sẵn sàng trong trại giống hoặc trong ao nuôi tôm thương phẩm
– Kích hoạt sự nảy mầm của vi bào tử nhiễm vào thức ăn cho tôm bố mẹ và tôm giống
– Kích hoạt hoặc ức chế sự nảy mầm trong đường tiêu hóa của tôm thịt, ngăn chặn các vi bào tử di chuyển lên gan tụy
– Ức chế sự nảy mầm trong ống gan tụy nhằm ngăn chặn vi bào tử EHP trong ống gan tiếp tục nhiễm vào tế bào vật chủ khỏe mạnh
2. Một số phương pháp kích hoạt hoặc ức chế vi bào tử chồi nhân tạo đã được báo cáo
2.1. Phương pháp kích hoạt bào tử nảy mầm bằng chùm electron trong kính hiển vi điện tử quét [T. Sathish Kumar et al., 2022]
Kích thích sự nảy mầm nhân tạo của bào tử Enterocytozoon hepatopenaei (EHP) bởi các ion được tạo ra bởi chùm electron trong máy hiển vi điện tử quét Scanning Electron Microscope. Trong nghiên cứu này, sự nảy mầm của bào tử EHP đã được cảm ứng và chứng minh bằng kính hiển vi điện tử quét (SEM – Scanning Electron Microscope). Các ion (cation – ion dương và anion – ion âm) được tạo ra bởi các điện tử năng lượng cao trong quá trình phóng xạ nước đóng băng trong buồng mẫu SEM gây ra sự nảy mầm của bào tử EHP.
2.2. Kích thích nảy mầm khi xử lý bằng dung dịch KOH 0,1N theo phương pháp của Bo Zhu [Bo Zhu et al., 2021]
Bào tử EHP nảy mầm sau khi làm sạch và xử lý bằng dung dịch KOH 0,1N trong 12h đạt được hiệu quả kích hoạt nảy mầm nhân tạo đạt được 50-60%.
2.3. Phương pháp kích thích nảy mầm bằng dung dịch Michaelis Veronal-acetate mới làm theo Earl Weidner [Earl Weidner et al., 1976]
Vi bào tử (N. michaelis) đã được kích thích để nảy mầm sau 90-120 phút được ủ trong dung dịch Michaelis Veronal-acetate mới làm. Dung dịch đệm này được chuẩn bị bằng cách thêm 9,7 g natri axetat và 14,7 g natri barbiturat trong nước cất không có carbon dioxide đến thể tích cuối cùng là 500 ml.
2.4. Một số phương pháp ức chế khả năng hoạt động của vi bào tử EHP bằng thuốc sát trùng được báo cáo tóm tắt [Diva J. Aldama-Cano et al., 2018]
– Sự ức chế hoàn toàn hoạt động đã được chứng minh bằng cách đóng băng các bào tử ở -20°C trong ít nhất 2 giờ.
– Xử lý bằng 15ppm thuốc tím ở trong 15 phút – ức chế 100%
– Xử lý bằng 40ppm Calcium hypochloride 65% hoạt tính trong 15 phút – ức chế 100%
– Xử lý bằng 10ppm Calcium hypochloride 65% hoạt tính trong 24 giờ – ức chế 100%
– Xử lý bằng dung dịch 20% ethanol trong 15 phút – ức chế 100%
– Xử lý bằng dd formalin đạt nồng độ 200ppm dẫn đến giảm khả năng nảy mầm tối đa 95,33%.
2.5. Xử lý mầm bệnh EHP trong nước ao bằng vôi sống CaO (hướng nghiên cứu này không nói rõ ức chế nảy mầm hay kích hoạt vi bào tử nảy mầm ngoài ao chứa)
Để xử lý mầm bệnh EHP lây nhiễm trong ao nuôi, sử dụng CaO (vôi sống) với liều lượng 6 tấn/ha để tiêu diệt bất kỳ bào tử còn sót lại và/hoặc vật mang mầm bệnh tiềm ẩn nào trước khi thả tôm giống không có EHP (PL) [Sritunyalucksana và cộng sự, 2015; Thitamadee và cộng sự, 2016]. Quy trình này áp dụng cho đáy ao đất, tốt nhất là rải lớp vôi xuống đáy ao, sau đó cày xới khoảng 10-12 cm và tiến hành làm ẩm lớp đất này để đẩy pH lên tới 10-12, sau khoảng một tuần thì lấy nước vào và sau một thời gian pH sẽ tự trở về mức thông thường.
2.6. Ức chế bào tử EHP nảy mầm bằng nhiệt ở 75°C trong thời gian 1 phút [Natthinee M. et al., 2021]
Natthinee M. et al., 2021 tiêm bào tử EHP đã xử lý nhiệt ở 75°C trong thời gian 1 phút và bào tử EHP không được xử lý vào tôm sạch bệnh. Sau khi tiêm 14 ngày thì tôm được xác nhận tính ở những mẩu được tiêm bào tử EHP không được xử lý. Những mẫu tôm được tiêm bào tử đã sốc nhiệt được xác nhận âm tính với EHP.
2.7. Ảnh hưởng của một số tác nhân tới tỷ lệ bất hoạt vi bào tử trùng nảy mầm [G. J. Leitch et al., 1993]
Bốn tác nhân đã được tìm thấy để ức chế quá trình đùn sợi cực tự phát và được kích thích bởi H2O2: Bao gồm chất gây rối loạn vi sợi, cytochalasin D; chất gây rối loạn vi ống, demecolcine; thuốc chẹn kênh canxi, nifedipine; và chất chống nấm, itraconazole. Những kết quả này phù hợp với sự tồn tại của một bước qua trung gian kênh canxi, các yêu cầu đối với F-actin và đối với một yếu tố chứa tubulin trong quá trình nảy mầm của bào tử của ký sinh trùng này. Nifedipine, cytochalasin D và itraconazole đều có những vị trí tác dụng khác nhau và do đó có thể tăng hiệu lực lẫn nhau khi được sử dụng kết hợp theo cặp để ức chế sự nảy mầm.
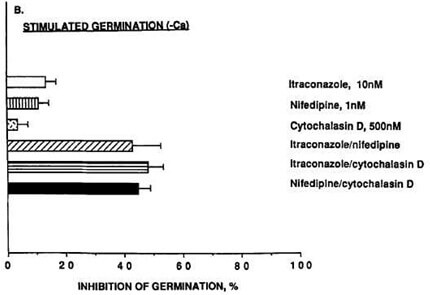
Hình 2: Ảnh hưởng của Itraconazole, Nifedipine, Cytochalasin D và các dạng thuốc phối hợp tới tỷ lệ ức chế nảy mầm của bào tử E. hellem [G. J. Leitch et al., 1993]
3. TÀI LIỆU THAM KHẢO
Binh Han et al., 2020, https://doi.org/10.3389/fmicb.2020.00172
Louis M. Weiss et al., 2014, https://doi.org/10.1002/9781118395264.ch10
Cali và Takvorian, 2014, https://doi.org/10.1128/9781555818227.ch3
T. Sathish Kumar et al., 2022, https://doi.org/10.1016/j.jip.2022.107820
Natthinee M. et al., 2021, Microsporidian Enterocytozoon hepatopenaei (EHP) spores are inactivated in 1 min at 75°C, http://dx.doi.org/10.1016/j.aquaculture.2020.736178
Haiyi Jiang et al., 2023, Ảnh hưởng của NO (Nitrogenous oxigen) lên khả năng nhân bản của EHP và khả năng miễn dịch của tôm gai, https://doi.org/10.1155/2023/2250046
Diva J. Aldama-Cano et al., 2018, Bioassay for spore polar tube extrusion of shrimp Enterocytozoon hepatopenaei, http://dx.doi.org/10.1016/j.aquaculture.2018.02.039
G. J. Leitch et al., 1993, https://doi.org/10.1111/j.1550-7408.1993.tb04463.x
Bo Zhu et al. 2021, https://doi.org/10.1016/j.aquaculture.2021.737726
Earl Weidner et al., 1976, The microsporidian spore invasion tube, https://www.academia.edu/
